
Potencial de Preservação e Tafonomia Atualística
Costumamos pensar em fósseis como sendo aqueles ossos reconstituídos em grandes esqueletos expostos na sala principal de algum museu de história natural, que uma grande equipe de paleontólogos escavou de rochas com centenas de milhões de anos. Ou em criaturas estranhíssimas, como os trilobitas, que viveram em oceanos há muito desaparecidos. Ou em mamíferos gigantes. Todos extintos. E as vezes em “fósseis vivos”, como os ginkgos ou os celacantos, cujas linhagens resistem ao tempo geológico.
Mas é possível fazer paleontologia com organismos atuais, vivinhos da silva. Principalmente com aqueles seres que deixam restos mineralizados, como os moluscos, que fazem conchas carbonáticas. Justamente porque é comparando comunidades atuais com os restos mortos deixados por seus integrantes que conseguimos estimar a fidelidade do registro fossilífero. Afinal, na maioria absoluta das vezes, os fósseis são formados a partir dos restos mortos, que foram soterrados. A ciência que estuda organismos e comunidades atuais sob a ótica paleontológica é chamada Paleontologia Atualística (ou Actuopaleontologia).
Da mesma forma, podemos investigar toda a sorte de fatores que afetam as comunidades vivas e seus restos, perguntando o quanto a preservação do ‘futuro’ fóssil apresenta boa ou má qualidade. Na praia, encontramos conchas mais “bonitinhas”, e outras totalmente corroídas, incrustadas e fragmentadas. Como isso acontece? Quanta informação biológica é perdida durante a preservação? Fica mais fácil estudar isso com organismos atuais, pois podemos medir fenômenos acontecendo na nossa frente. O estudo da qualidade da informação biológica presente nos fósseis é chamado Tafonomia. E, tafonomia com organismos atuais é Tafonomia Atualística.

Uma acumulação de restos mortos é produzida a partir de comunidades vivas que são naturalmente heterogêneas (diferentes cores na imagem). Nem todos organismos vivos deixam restos mortos acumulados no local. Eventualmente, restos mortos de outras comunidades podem ser carreados. A medida que acontece o soterramento, e é formada uma associação fossilífera, mais informação biológica é perdida. Por isso, a obtenção de uma amostra fóssil e a consequente interpretação biológica e ambiental realizada são tarefas bastante delicadas, pois existem várias fontes de enviesamentos. (A figura foi modificada a partir de Kidwell & Flessa, 1996.)
Palaeontology’s greatest ever graphs:
Kidwell’s Model for fossil concentrations
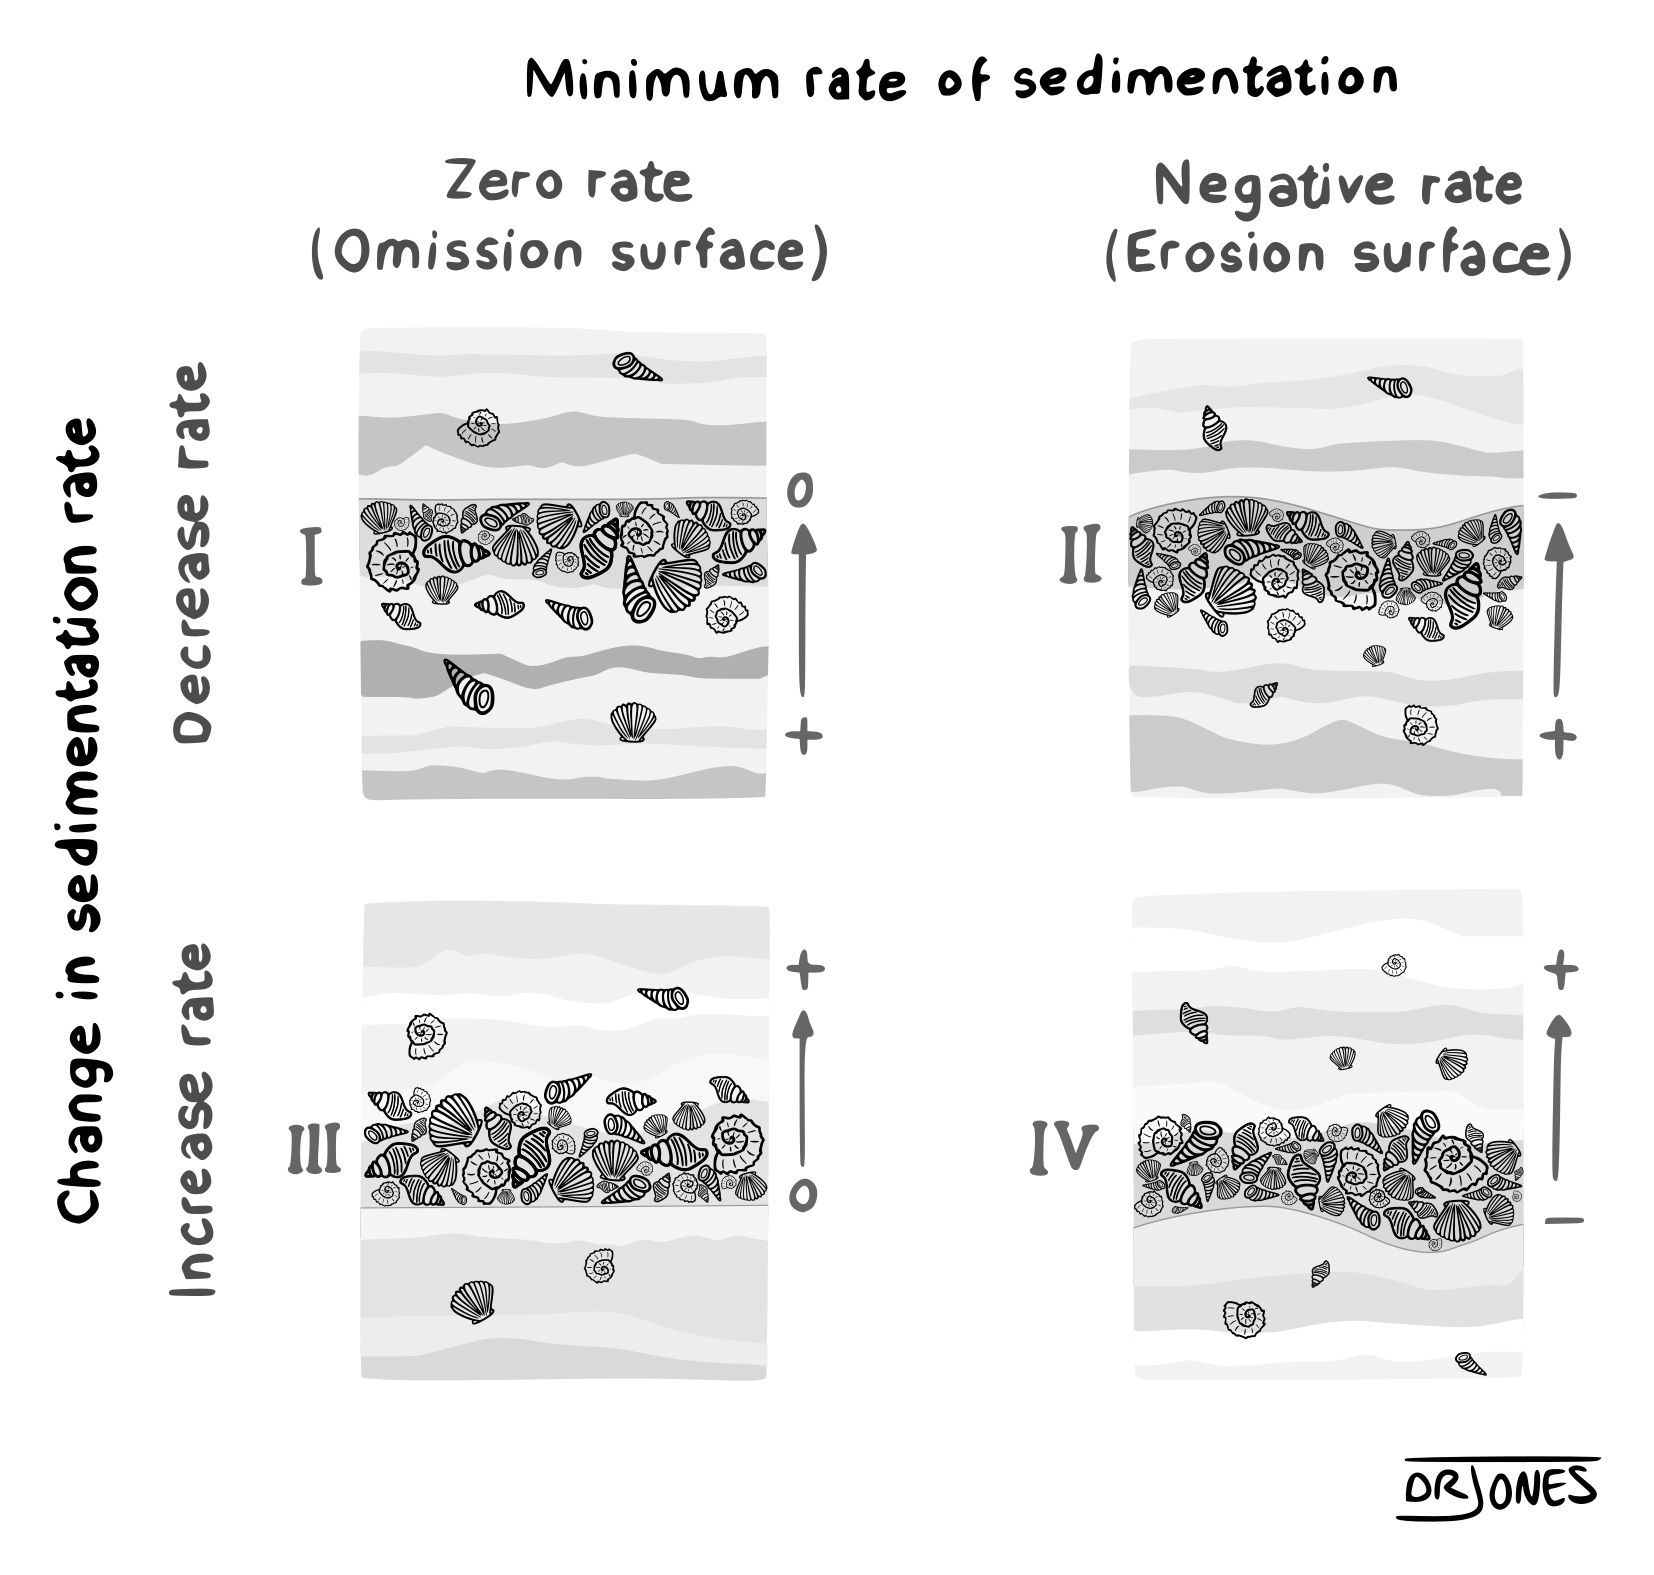
To understand how fundamental Figure 1, reproduced above, in Kidwell (1985; for short, I will call it K1985F1) is, in my view, for quantitative taphonomy, I need some geographical context. In Southern Brazil, near the Atlantic side of Mangueira Lagoon, the third largest lagoon of the Rio Grande do Sul State, there is a beach called Praia dos Concheiros (literally “made of shells” beach). There, Pleistocene– Holocene mollusk (and other skeleton-bearing organisms) shells are exposed at the shore. This beach is an exposed, unconsolidated coquina, deposited in an ancient nearshore setting when the sea level was several metres above its present-day position. This place has twice figured on the cover of the journal PALAIOS (SEPM).
Despite the age of this short-lived sea-level highstand deposit being well known (some 6 kyr BP, with some controversies), the shells in Concheiros may be significantly older. During the last 20,000 years, the sea level there rose from c.160 metres below to c.4 metres above its present position. Little siliciclastics were fed to this temperate basin at the time (the climate was cold and dry, with little weathering), but high benthic productivity induced by the discharge of the nutrient-rich La Plata River (do not mistake it with the River Plate soccer team) allowed much bioclast input.
This shell bed extends offshore. Several elongated, shell-rich banks are known up to depths of 50 metres in the underwater region known as Albardão Platform. They result from time intervals when the sea level stabilized, forming beaches, but the shells were being carried onshore during the last 20 kyrs. To me, this is a perfect scenario to explore the implications of K1985F1. It is easy to grasp how the product of sedimentation rates × omission/winnowing × shell production behaves in the sense of K1985F1’s paradigm, especially when one lives close to a (presently) sediment-starved passive continental margin, such as 30º3’56”S, 51º14’09”W (just a reference).
When I first really studied K1985F1, during my PhD, I did not fully realize I was going to be permanently tied to it. The material I used, shells from the topmost sediments of the Southern Brazil Continental Shelf, are still material for ideas I have put in the oven of my mind. My addiction to this figure has also a historical reason. It was published the year before the first issue of PALAIOS was released, inaugurating what I like to think of as “modern” Taphonomy.
The figure shows a conceptual framework to predict the occurrence of fossil concentrations: It allows interpreting variations in sedimentation rate based mostly on the density of bioclasts and the sharpness of top and base contacts. The dilution by clastic sediment also allows estimating the relative degree of time-averaging. This graph may not reveal a universal pattern explaining from where we have come and where we are going, but it reveals a simple truth (and its deep roots) about the formation of the fossil record, especially in ordinary concentrations: biological remains stay despite sediment removal. It also somehow distorts an important rule of taphonomy, that biological remains behave as sedimentary particles.
As Kidwell stated in 1985, the dynamics of sedimentation shown in this graph have immediate implications for assemblages collected from both fossil-rich and fossil-poor strata. Erosive base and/or top indicate severe time-averaging, and this probably occurred in the shelly deposits from Praia dos Concheiros and Albardão. The graph (and its expanded guide, Kidwell 1986) allowed a chain of events: namely, successive publications that showed an inexorable change in knowledge, which is on the way to becoming a scientific commonsense! Net sedimentation rate is the kernel control of hardpart concentration, preservation state and the degree of ecological resolution interpretable from fossil accumulations.
At least two perspectives may have led Kidwell to the concept of this figure. First, the “simple” realization that “the less sediment, the more fossils”. High sedimentation rates equal low palaeontological interest, or at least this is true for non-taphonomists. The other perspective derives from ecological modification of benthic habitats induced by removal of fine sediment and enrichment in large bioclasts, further allowing hard-bottom taxa to establish and develop. The palaeoecologist’s dream of finding a fossilized ecological succession.
Naturally, K1985F1 is more frequently used to examine fossils from marine or coastal accumulations. Fine. But fossiliferous freshwater deposits, including those not mollusk- or other invertebrate-based, can also be (better) explained under this paradigm. I used the word “paradigm”, because the equation sedimentation rate × hardpart production × omission/ winnowing is still under construction. The taphonomic revolution will be complete when all fossil deposits are proven predicted or predictable by K1985F1. But taphonomists also fear (and expect) dense fossil layers with contrasting patterns in their preservation states or taxonomic composition, because there lie high quantities of interpretable information. This is my reason to practise taphonomy: to suffer when extracting data and then struggle to ordinate it intelligibly, but never departing from the gem of achieving a comprehensive theory, useful for a broader readership.
Texto originalmente publicado pela:
Paleobiologia da Conservação e as contribuições da Paleontologia
Como os impactos antropogênicos nos sistemas ecológicos são antecedentes às observações científicas mais antigas, assim como documentos históricos e registros arqueológicos, a compreensão de alterações naturais ou antrópicas modernas exige fontes de dados adicionais que se estendam a um passado mais remoto. Os registros paleoecológicos, que fornecem registros quantitativos dos ecossistemas antes do impacto humano são essenciais para entender as extinções recentes e os riscos futuros de extinção. Essa nova e emergente abordagem interdisciplinar, intitulada Paleobiologia da Conservação, ainda é praticamente desconhecida no Brasil. Mais importante ainda, suas aplicações e técnicas derivadas da Paleontologia (particularmente da Tafonomia Atualística) são ferramentas muito válidas em um país onde os estudos ecológicos de longo prazo são raros. Enquanto os dados paleoecológicos são censos intrinsecamente restritos de comunidades passadas (experimentos manipulativos não são possíveis), eles produzem registros quantitativos em escalas temporais que estão além do alcance da ecologia. Somente através da inclusão de dados paleoecológicos será possível avaliar plenamente o papel dos processos antropogênicos de longo prazo sobre comunidades bentônicas modernas.
Veja mais:
Ainda, você sabia que desde o início desse ano existe uma rede de cientistas em todo o mundo engajados em consolidar essa ciência? A rede internacional The Conservation Paleobiology Research Coordination Network visa congregar esforços com à sociedade e os governos locais em prol da conservação com uma visão paleontológica. O Prof. Matias Ritter (CECLIMAR, UFRGS) é um dos pesquisadores responsáveis por ações dessa rede na América do Sul. Essa postagem é um projeto participante do Programa Ciência na Sociedade Ciência na Escola, PROPESQ/UFRGS.


A figura, acima, ilustra a extensão temporal e particularidades de diferentes tipos de estudos (parte superior da imagem) no contexto do desenvolvimento cultural humano. Os tipos de registro são classificados como dominantemente de uma categoria (quadrado preto), parciais (cinza) ou quando não são tipicamente desta categoria (brancos). A largura das barras reflete a abundância relativa desses dados durante esses períodos. Os intervalos culturais antrópicos são baseados em Lotze et al. (2006). Instrumentação (em tempo real) e experimentos são os registros mais precisos, embora sejam concomitantemente os mais restritos espacial- e temporalmente. Os registros mais longos se estendem no máximo até o período anterior a Era moderna. Estes registros incluem medidas de CO2 atmosférico, variações do nível relativo do mar e registros contínuos de temperatura. Os Programas Ecológicos de Longa Duração (PELDs), raramente se estendem para períodos mais antigos do que a globalização (1950). De forma geral, as observações diretas e contínuas, como monitoramento de aves e plâncton são as observações ecológicas mais longas. A Lista vermelha da IUCN é estendida até o início da era moderna para refletir extinções documentadas através de dados históricos. Registros arqueológicos e escrituras históricas possuem lacunas temporais e espaciais, embora se prolonguem temporalmente. Dados paleoecológicos, assim como informações recuperadas de furos de sondagem, embora também descontínuos, são os que possuem a maior extensão temporal, muito além da história humana. Neste sentido, estes tipos de dados são extremamente importantes para adquirir perspectivas em longo prazo sobre a dinâmica de espécies, comunidades e ecossistemas
O que é Time Averaging?
O registro fóssil é caracterizado tanto por raros depósitos contemporâneos (instantâneos), quanto por depósitos condensados. Estes últimos podem conter uma escala temporal de milhares ou até milhões de anos de informação. Contudo, a maior parte do registro fóssil é composta por remanescentes biológicos não contemporâneos, time-averaged, contidos entre estes dois extremos (Ritter & Erthal, 2016). O time-averaging é um tópico fundamental na Paleontologia, uma vez que sua magnitude define a resolução temporal do registro fóssil e, portanto, a precisão dos estudos não somente paleoecológicos como também evolutivos.
Time-averaging, um processo intrínseco ao registro fóssil, pode ser definido como a acumulação de remanescentes biológicos durante um intervalo de tempo superior à vida de um organismo. O conceito de time-averaging, como originalmente proposto, remete à mistura de gerações biológicas ao longo de um determinado intervalo de tempo.
O termo mistura temporal (= temporal mixing), por outro lado, não é sinônimo de time-averaging. Embora o seu conceito seja amplo e subjetivo, pode ser definido simplesmente como a variabilidade total de idades dentro de uma associação morta/fóssil (ou camada geológica). É importante pontuar que devido ao retrabalhamento, organismos de camadas geológicas mais antigas (em termos de milhares ou milhões de anos) podem ser adicionados a depósitos mais recentes. Um exemplo clássico de retrabalhamento são dentes de dinossauros encontrados em sedimentos do Paleógeno (Cenozoico). Neste caso, o termo mistura temporal é também o mais adequado. Time-averaging, contrariamente, remete ao processo específico de mistura de gerações durante períodos de sedimentação nula ou muito baixa (numa escala de tempo não superior a milhares de anos).

Magnitudes relativas (eixo x inferior) e absolutas (eixo x superior) de time-averaging comparadas com escalas de processos ecológicos, evolutivos e geológicos (eixo y) (modificada por Ritter & Erthal, 2016 a partir de Erwin, 2006).
Referências:
E o que é Tafonomia Quantitativa?
Fenômenos naturais permitem interpretações bastante complexas, e isso é particularmente verdade em ciências naturais históricas, como a paleontologia. A tafonomia, que estuda como acontece a fossilização dos organismos consideradas todas as variáveis ambientais e biológicas envolvidas, depende muito de ferramentas capazes de remover subjetividades durante a análise científica. Então, como se faz para determinar, quantitativamente, o grau de influência biológica e ambiental (pré-soterramento), ou sedimentar (durante o soterramento), ou mesmo diagenética (após o soterramento final), a partir do estado de preservação dos fósseis? E daqueles restos ainda não soterrados? E de organismos provenientes de vários subambientes? E de organismos de diferentes grupos taxonômicos ou ecológicos? Tantas perguntas podem ser sistematicamente respondidas utilizando um ramo da estatística já velho conhecido da Ecologia: Análise Multivariada. Dessa forma, fica até fácil manusear grandes listas e tabelas de dados com dezenas de variáveis biológicas (e.g. táxons), variáveis tafonômicas (atributos ou assinaturas – estados de dano), variáveis ambientais (granulometria/composição do sedimento, padrões de paleocorrente ou energia hidrodinâmica, salinidade, oxigenação, temperatura…), tudo isso mensurado numa quantidade bastante grande de amostras ou réplicas. É razoável denominar esta ‘área’ da paleontologia de Tafonomia Quantitativa.

Sugestões de softwares
Pacotes do R
Sugestões de scripts para sua análise
SPSS
Um dos primeiros softwares complexos para análise estatística
PAST
Simples, mas funcional